Black Trap Codex
Nepenthes hamata
Haken-Kannenpflanze
Kurzprofil
Kultur auf einen Blick
- Schwierigkeit
- 5 / 5 · spezialisiert1 = sehr leicht, 5 = Spezialkultur.
- Licht
- 3 / 5 · hell1 = schattig, 5 = volle Sonne.
- Wasser
- feuchtBeschreibt die Feuchtefuehrung im Topf, nicht die Luftfeuchte.
- Ruhephase
- neinOb die Art eine saisonale Ruhephase braucht.
- Fehlertoleranz
- geringWie stark Kulturfehler verziehen werden.
Kulturgruppe
Nepenthes – Hochland
Kulturgruppe für Nepenthes aus tropischen Hochlagen mit ausgeprägter nächtlicher Abkühlung.
Habitat-Logik
Tropische Berg- und Nebelwälder mit hoher Luftfeuchte, guter Luftbewegung und deutlich kühleren Nächten.
Kultur-Logik
Mäßig warme Tage, deutlich kühlere Nächte, hohe Luftfeuchte und kontinuierlichen Luftaustausch bereitstellen.
Substrat-Logik
Sehr locker, grobporig, strukturstabil und stark durchströmt bei gleichmäßiger leichter Feuchte.
Risiken der Kulturgruppe
Gattungsprofil
Nepenthes
Tropische Kannenpflanzen mit ausgeprägter Höhenstufung von warmem Tiefland bis zu kühlem Ultrahochland.
Habitat-Logik
Tropische Regenwälder, Berg- und Nebelwälder sowie offene nährstoffarme Standorte Südostasiens und angrenzender Regionen.
Kultur-Logik
Temperatur, insbesondere die Nachttemperatur, Luftfeuchte und Luftaustausch müssen zur Höhenstufe der jeweiligen Art passen.
Substrat-Logik
Sehr locker, grobporig, strukturstabil und gleichmäßig leicht feucht, ohne anaerobe Staunässe.
Typische Fehler
Zu dichtes Substrat, dauerhaft nasse Wurzeln, ungeeignete Nachttemperaturen, geringe Luftfeuchte und fehlender Luftaustausch.
Risiken
Worauf diese Art empfindlich reagiert
reference
Botanische Beschreibung
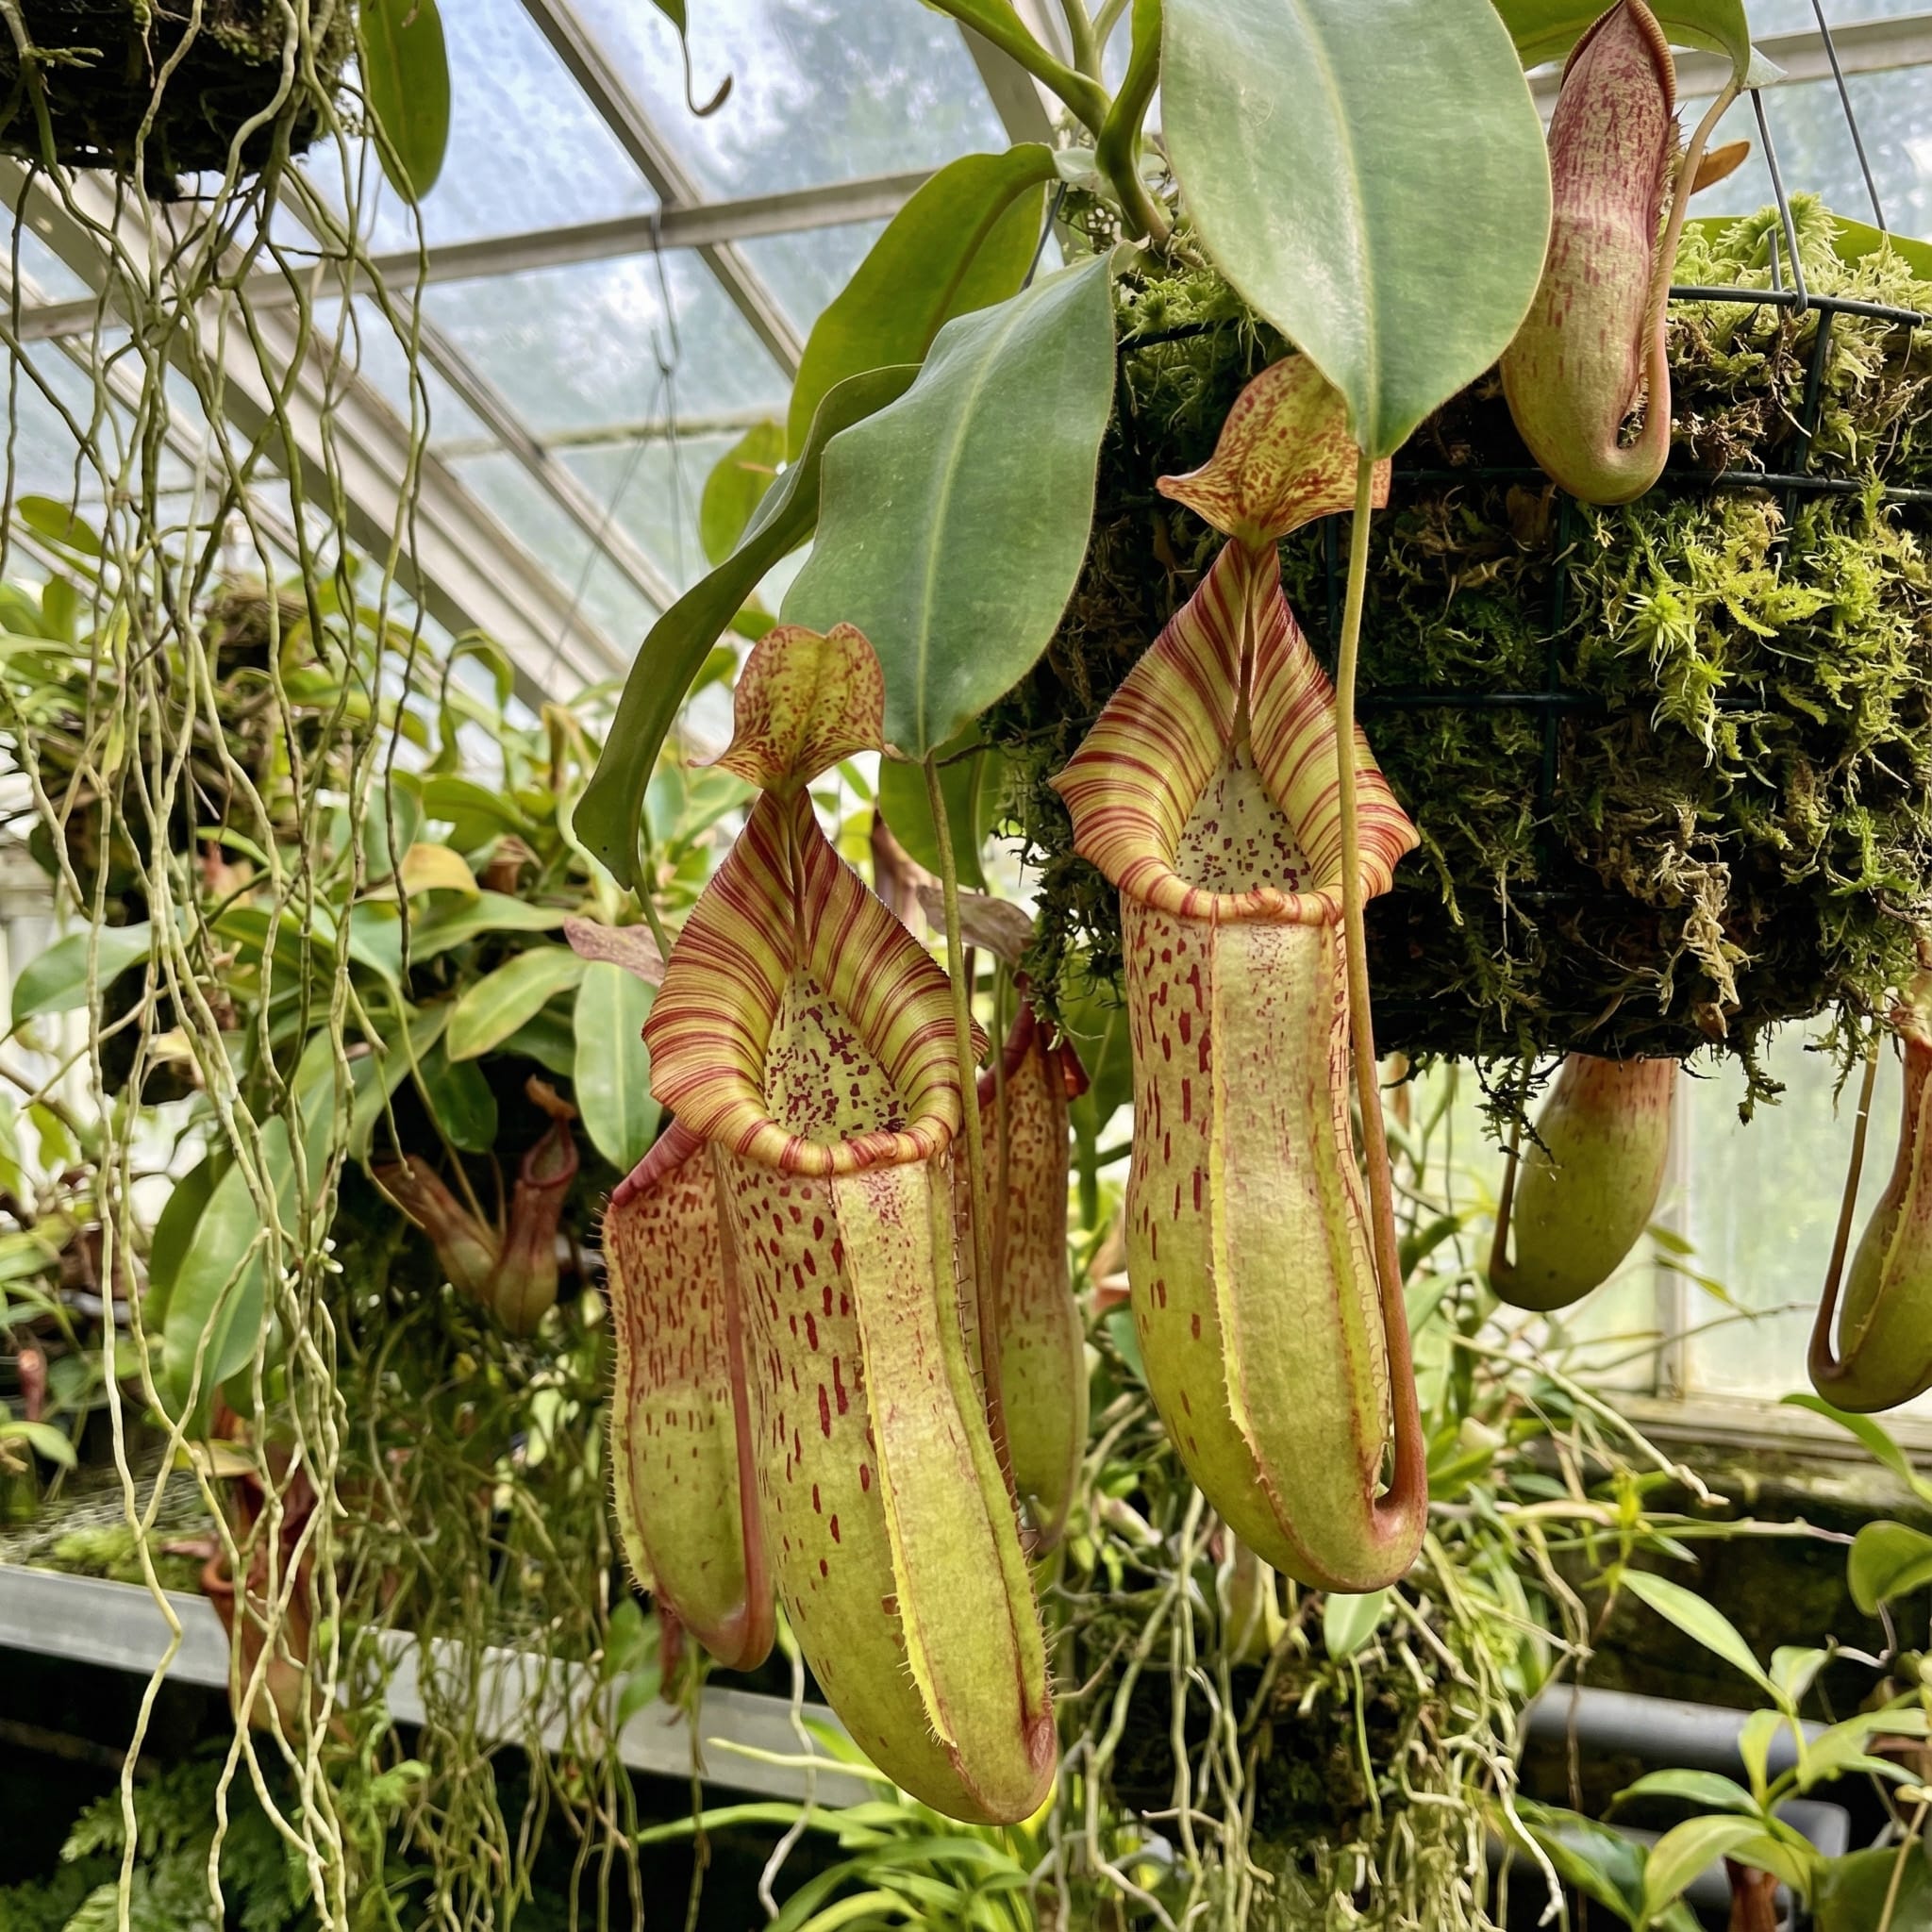
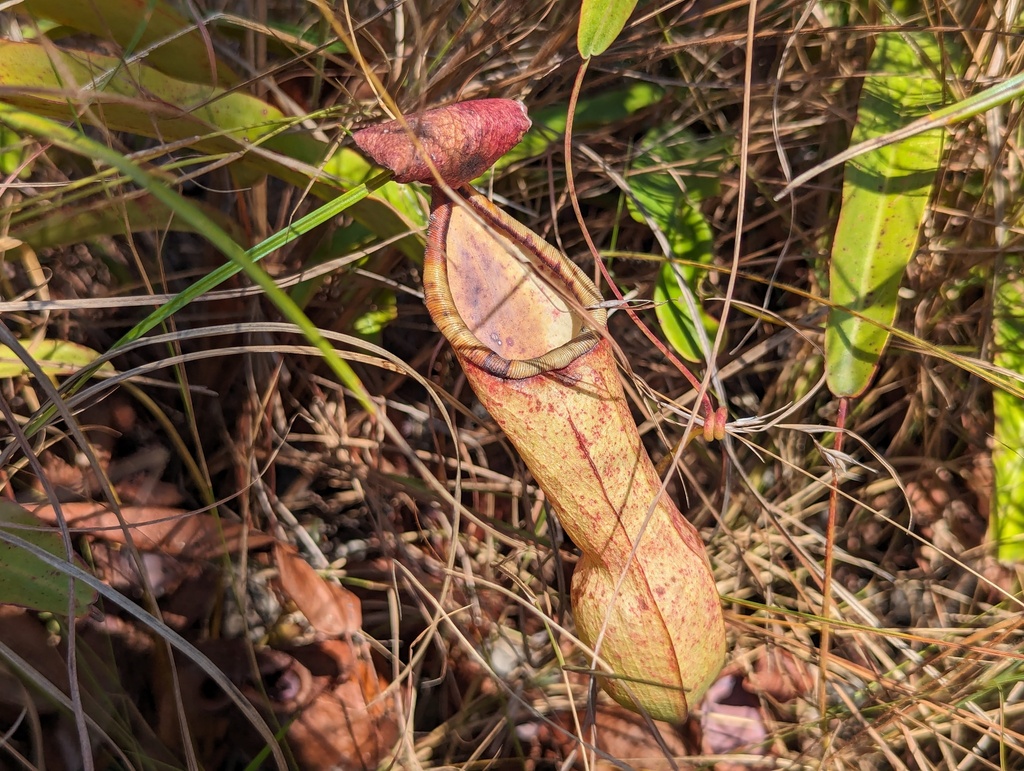
Nepenthes hamata ist eine kletternde Kannenpflanze aus den Bergen Zentral-Sulawesis. Junge Pflanzen bilden zunächst niedrigere Triebe mit kleinen Kannen; ältere Sprosse können in der Vegetation emporwachsen. Jedes Kannenblatt besteht aus einer grünen Spreite, einer Ranke und einer am Rankenende entwickelten Fangkanne. Die Art ist besonders am stark gerippten Kannenrand zu erkennen. Seine langen, nach innen gebogenen Fortsätze wirken wie Haken; aus diesem Merkmal leitet sich der Artname ab.
Die Originalbeschreibung nennt für ausgewachsene Klettertriebe schmale, lederartige Blätter und obere Kannen bis etwa zwanzig Zentimeter Länge. Ihre Mündung ist schräg und der Rand relativ schmal, aber auffällig gezähnt. Ein Deckel steht über der Öffnung; auf ihm können fadenförmige Anhänge sitzen. Zwischen einzelnen Kannen derselben Pflanze variiert die Ausbildung der Haken deutlich. Ein junges Exemplar mit noch kleinen Kannen kann deshalb weniger spektakulär aussehen als die häufig abgebildeten adulten Pflanzen.
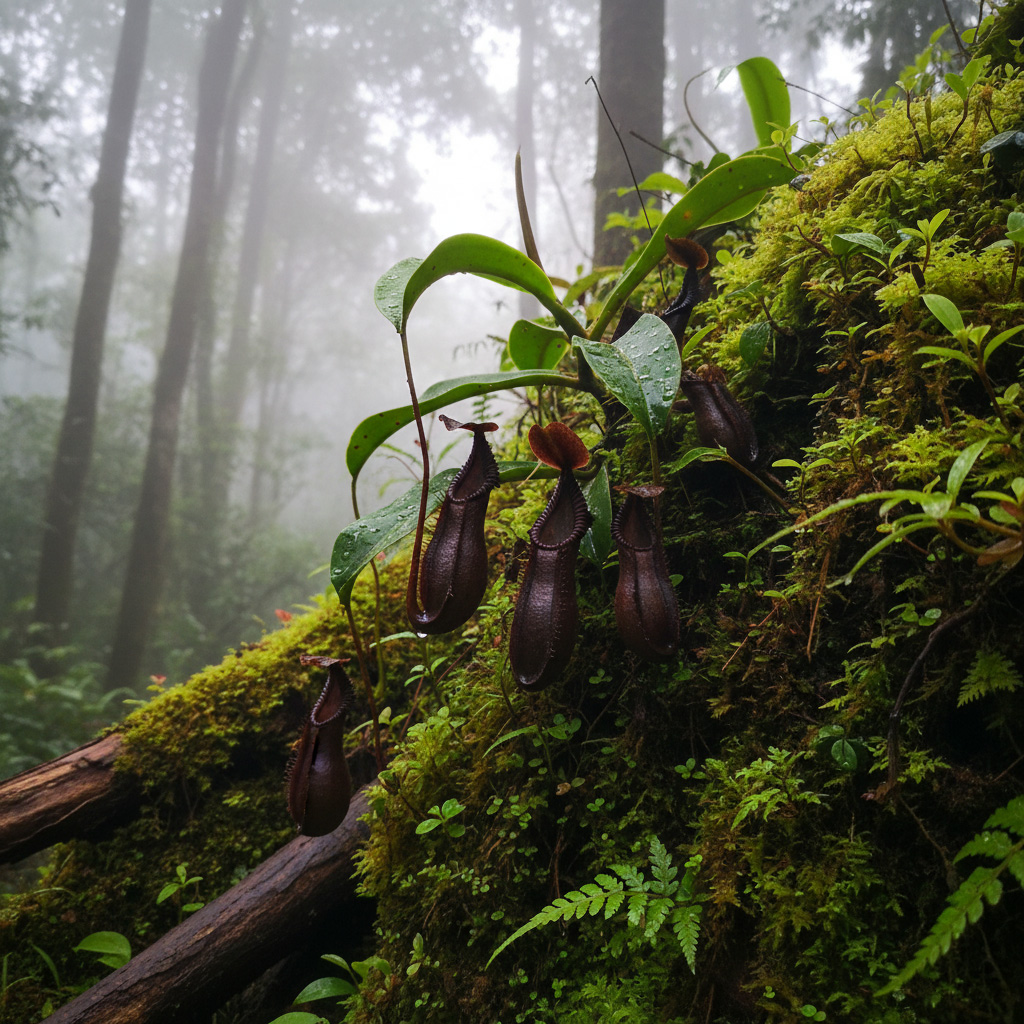
Die bekannten Typuspflanzen wuchsen in Moos auf steilen Höhenrücken und kletterten in Gehölze über Felskanten. Das ist eine konkrete Feldbeobachtung und keine universelle Aussage, dass jeder Klon epiphytisch wachsen müsse. Kannen und Blattentwicklung hängen auch in der Kultur von Pflanzenalter und Mikroklima ab. Ein fehlender großer Haken an einer einzelnen Jugendkanne widerlegt die Artbestimmung nicht; eine sichere Zuordnung stützt sich auf reife Kannen, Blattbasis und nachvollziehbare Herkunft.
taxonomy
Taxonomie
Der akzeptierte Name ist Nepenthes hamata J.R.Turnbull & A.T.Middleton. John R. Turnbull und Anne T. Middleton beschrieben die Art in Reinwardtia. Die bibliografische Geschichte ist ungewöhnlich: Der Band wird teils mit 1985 geführt, die betreffende Veröffentlichung wurde 1984 vorab ausgegeben. Der Name sollte mit der bestätigten Autorenkombination eingetragen werden, ohne aus dem Publikationsjahr einen zweiten Taxon-Datensatz zu erzeugen. Die Familie ist Nepenthaceae.
Der Name Nepenthes dentata Sh.Kurata steht in der aktuellen taxonomischen Behandlung als heterotypisches Synonym. Das bedeutet, dass eine anders typisierte Benennung unter dem akzeptierten Artkonzept von N. hamata zusammengeführt wird. Ein Sammlungslabel mit „dentata“ ist daher nicht automatisch eine zweite gültige Art. Bei älterer Literatur muss dennoch geprüft werden, welche Pflanze jeweils tatsächlich gemeint war. Die Originalautoren verglichen junge Pflanzen mit N. tentaculata und nannten die deutlichen Randrippen als wichtiges Trennmerkmal.
Hakenstärke und Kannenfarbe schwanken im Verlauf der Entwicklung und zwischen Herkünften. Verkaufsnamen, Bergnamen und farbige Klonbezeichnungen sind als Provenienzangaben oder Kulturkennungen zu behandeln, solange keine gültige taxonomische Veröffentlichung vorliegt. Die alte Beschreibung einer absoluten morphologischen „Peristom-Zahnpflicht“ bei jeder Jugendkanne wäre zu streng. Für den Codex bleiben der akzeptierte Name, das Synonym und die Originaldiagnose die festen Bezugspunkte; unklare Handelsformen werden nicht durch den Arttext legitimiert.
ecology
Standort und Verbreitung
Die Art ist auf Sulawesi in Indonesien heimisch; der akzeptierte Verbreitungsdatensatz benennt insbesondere Zentral-Sulawesi. Die Originalbeschreibung belegt den Typus am westlichen Rücken des Gunung Lumut in etwa 1850 bis 1900 Metern Höhe. Weitere damals untersuchte Belege stammen unter anderem von höher gelegenen Bergen um 2000 bis 2500 Meter. Daraus folgt eine montane Herkunft der untersuchten Pflanzen. Die häufig genannte Untergrenze von 1400 Metern wird hier nicht als durch den Originalartikel bestätigte Artgrenze ausgegeben.
Turnbull und Middleton beobachteten die Art an zwei steilen Höhenrücken. Die Pflanzen wurzelten in Moos und kletterten in Bäume, die über einen Abhang ragten. An den unmittelbar untersuchten Stellen fanden die Autoren keine andere Nepenthes direkt daneben. Diese Beobachtung ist lokal und erlaubt keine Behauptung, die Art komme überall allein vor. Ebenso wenig deckt sie eine allgegenwärtige epiphytische Lebensweise oder einen festen pH-Wert ab.
Die exponierten Höhenrücken legen eine luftige, feuchte und nachts abkühlende Umgebung nahe. Konkrete Kulturtemperaturen, relative Luftfeuchten oder jährliche Niederschlagssummen wurden am Typusstandort im zitierten Artikel jedoch nicht gemessen. Deshalb trennen die folgenden Kulturabschnitte Feldbefund und gärtnerische Ableitung. Ein Standort auf Moos über Fels kann zugleich stark feucht und gut belüftet sein; „feucht“ darf nicht mit stehender Nässe im Topf gleichgesetzt werden. Lokale Herkunftsangaben sind für Vergleiche zwischen Kulturpflanzen wichtig.
ecology
Ökologische Anpassungen
Die Pflanze verbindet kletternden Sprosswuchs mit Blättern, die an ihren Ranken Kannen tragen. An den steilen Rücken kann sie durch Moos und Gehölze wachsen, während Kannen in verschiedenen Höhen der Vegetation hängen. Juvenile und adulte Kannen unterscheiden sich, und selbst zwischen reifen Kannen derselben Pflanze kann die Ausprägung des gezähnten Randes variieren. Dieser Entwicklungsbezug ist biologisch wichtiger als ein Bild einer besonders spektakulären Einzelkanne. Eine vermeintlich schwache Jugendkanne ist nicht automatisch eine andere Art.
Der gerippte Kannenrand kann bei Nässe Teil des für Nepenthes bekannten rutschigen Fangsystems sein. Eine theoretische Studie zu unterschiedlichen Kannenrändern zeigt jedoch ausdrücklich, dass die besondere Funktion großer Zähne noch unzureichend belegt ist. Für N. hamata wurde aus dem Modell keine artspezifische Fangquote gemessen. Die Haken könnten den Rückweg großer Tiere beeinflussen, doch das bleibt Hypothese. Aussagen wie „mechanische Beutefixierung ist nachgewiesen“ oder „Zähne erhöhen die Fangrate deutlich“ werden daher gestrichen.
Die Hochlagenherkunft spricht für eine Kultur mit kühleren Nächten, Feuchte und Luftaustausch. Die Originalbeobachtung, dass die Pflanzen in Moos wurzelten, unterstützt ein lockeres Wurzelmedium. Sie belegt weder ein exaktes Mischungsverhältnis noch die Notwendigkeit ultrakalter Nächte. Die Pflanzen bilden keine temperierte Winterruhe; ihr Wachstum kann aber unter ungeeigneten Bedingungen stocken. Solche Reaktionen müssen an der konkreten Linie beobachtet werden, bevor eine Temperatur als allgemeine Artgrenze ausgegeben wird.
reference
Wuchsform und Morphologie
Der adulte Klettertrieb trägt zerstreute, lederartige Blätter. Die Originaldiagnose nennt elliptische bis lanzettliche Spreiten bis ungefähr fünfzehn Zentimeter Länge und zwei Zentimeter Breite, mit auffallend schiefem, fast stängelumfassendem Blattgrund. Mehrere längs laufende Blattnerven begleiten die Mittelrippe. Eine Ranke kann deutlich länger als die Spreite werden und sich krümmen. Diese Blattbasis ist für den Vergleich mit verwandten Arten nützlicher als die Frage, ob eine Kanne auf einem Foto grün oder dunkelrot erscheint.
Die oberen Kannen werden bis ungefähr zwanzig Zentimeter lang. Ihr unterer Abschnitt ist eher eiförmig, darüber verengt sich die Form oder wird röhrig. Die Mündung steht schräg. Der Rand ist nicht besonders breit, trägt aber kräftige, gleichmäßig verteilte Rippen, die als Haken in die Öffnung krümmen. Die Erstbeschreibung gibt für die Haken einen Abstand von etwa vier bis sechs Millimetern an; dieser Wert betrifft das untersuchte adulte Material. Der Deckel ist elliptisch bis eiförmig und kann fadenförmige Anhänge tragen.
Die Originalautoren betonten selbst die Variation der Haken von Kanne zu Kanne. Große Kannen an Klettertrieben zeigen sie am deutlichsten. Junge Pflanzen mit Zwischenformen wurden gegenüber N. tentaculata über das markant gerippte Peristom abgegrenzt. Eine Diagnose aus nur einer unreifen Bodenkanne bleibt vorsichtig. Beim Erfassen eines Klons sollten deshalb Kannenstadium, Blattbasis, Mundrand und möglichst eine verlässliche Herkunft zusammen dokumentiert werden. Die Art ist zweihäusig wie die Gattung; Blütenmerkmale sind für viele Kulturpflanzen mangels Blüte praktisch nicht verfügbar.
reference
Carnivore Strategie
Nepenthes hamata besitzt passive Fallgruben. Beutetiere besuchen die Kanne und können vom Rand in den flüssigkeitsgefüllten Innenraum gleiten. Bei Nepenthes ist ein benetzter, fein gerippter Peristomrand als rutschige Fangfläche gut untersucht. Für die stark vergrößerten Zähne dieser Art fehlt dagegen ein direkter Nachweis, welche Beute sie unter Feldbedingungen zusätzlich zurückhalten. Ihre eindrucksvolle Form ist ein sicheres morphologisches Merkmal, ihre genaue Funktion bleibt eine Forschungsfrage.
Eine Modellarbeit ordnet N. hamata den Arten mit auffällig gezähntem Rand zu, verwendet für Berechnungen aber überwiegend andere Arten und vereinfachte geometrische Annahmen. Das erlaubt eine plausible Hypothese zur Wirkung von Rippen und Zähnen, keine gemessene Fangsteigerung von N. hamata. Auch ein eigener, artspezifischer Beuteschwerpunkt ist in den hier geprüften Quellen nicht belegt. Es wäre falsch, Boden- und Hochkannen ohne Feldmessung verschiedenen Arthropodengruppen fest zuzuweisen.
Der untere Kannenbereich ist an Nährstoffaufnahme beteiligt. Gattungsforschung beschreibt Verdauungsflüssigkeit und Drüsen, doch konkrete Enzymmengen, Zähigkeit und Lebensgemeinschaften für diesen Sulawesi-Klon wurden nicht nachgewiesen. Deshalb nennt der Text keine verifizierte Zusammensetzung der hamata-Flüssigkeit. In Kultur darf eine fehlende Beute nicht automatisch durch starke Wurzeldüngung ausgeglichen werden. Gesunde neue Blätter und Kannen zeigen die Kulturentwicklung besser als das Zählen gefangener Insekten in einer einzelnen alten Kanne.
reference
Reproduktion und Lebenszyklus
Wie andere Nepenthes ist die Art zweihäusig: männliche und weibliche Blüten werden an verschiedenen Individuen gebildet. Ein einzelner Klon kann daher nicht durch eigene Pollen eine reine Samenlinie erzeugen. Die Originalbeschreibung enthält Fruchtmaterial; der Typus wurde fruchtend gesammelt. Blütenstände und Kapseln erlauben zusätzliche Beobachtungen, fehlen aber bei vielen jungen Kulturpflanzen. Eine vermeintlich sichere Artbestimmung allein aus dem Zustand eines nicht blühenden Jungpflanzenklons bleibt begrenzt.
Nach passender Bestäubung können zahlreiche leichte Samen entstehen, die der Wind verbreiten kann. Für eine als reine Art angebotene Samennachzucht müssen beide Eltern und die Bestäubung nachvollziehbar sein. Im Gewächshaus können andere Nepenthes in Reichweite blühen; ein unsicherer Vater macht die Nachkommenschaft taxonomisch unsicher. Die ältere Profilversion behauptete eine feste Keimdauer und kurze Keimfähigkeit speziell für N. hamata, ohne belastbare artspezifische Versuche zu nennen. Solche Werte werden nicht fortgeführt.
Vegetative Vermehrung über geeignete Triebstecklinge kann einen vorhandenen Klon erhalten, setzt aber gesunde Sprosse und passende Kulturbedingungen voraus. Sie bewahrt den Genotyp und ersetzt keine genetische Vielfalt einer Wildpopulation. Ein hochgewachsener Klettertrieb kann nach Rückschnitt seitlich austreiben; daraus folgt keine Pflicht zum häufigen Schneiden junger Pflanzen. Für die Sammlung werden Herkunft, Geschlecht bei beobachteter Blüte, Klonbezeichnung und Vermehrungsweg getrennt dokumentiert. So bleiben morphologische Unterschiede zwischen Linien überprüfbar, ohne einen Handelsnamen als neue Art auszugeben.
culture
Kulturrelevante Schlussfolgerungen
Die bekannten Fundorte liegen auf montanen, bemoosten Rücken. Eine Hochlandkultur mit tagsüber moderaten Bedingungen, nachts spürbarer Abkühlung, ausreichend Luftfeuchte und Bewegung der Luft ist daraus eine vernünftige gärtnerische Ableitung. Die bisherige Zuordnung zum Profil „Ultrahochland“ ist jedoch schärfer als die Originalbeobachtungen belegen. Das vorhandene Profil `nepenthes-highland` beschreibt kühle Nächte und offenes Medium, ohne eine besonders extreme Kältestufe zu behaupten. Für diesen Art-Review wird die Verknüpfung daher auf die Hochlandgruppe und das Hochlandprofil umgestellt.
Die Wurzeln sollen in einem feuchten, lockeren Medium stehen. Regelmäßiges Gießen mit mineralarmem Wasser und anschließendes Ablaufen schützt besser vor Verdichtung als ein stehender Wasseranstau. Helles, gefiltertes Licht kann Blatt- und Kannenbildung fördern; ungeschützte Mittagshitze in einem geschlossenen Behälter wird vermieden. Exakte Tag- und Nachtwerte, eine relative Luftfeuchte von 70 bis 90 Prozent oder eine Temperatur, oberhalb derer Kannen „metabolisch ausfallen“, sind für diese Art nicht durch die herangezogenen Primärdaten bestimmt.
N. hamata besitzt keine temperierte Winterruhe. Der Rhythmus des verknüpften Profils sieht Kontrollen alle 14 Tage im Wachstum und alle 7 Tage für Sämlinge vor. Ein hinterlegter 21-Tage-Ruhewert ist bei dieser Art ohne tatsächlich dokumentierte Ausnahmesituation keine Aufforderung zu einer Kälte- oder Trockenruhe. Werden neue Blätter kleiner, Ranken trocken oder Kannenansätze abgeworfen, werden Temperaturverlauf, Wasserhaushalt, Licht und Wurzeln gemeinsam geprüft. Eine einzelne leere Kanne ist kein Beweis für den Ausfall eines ganzen Kultursystems.
substrate
Substrat-Ökologie
Am Typusstandort wurzelten die beobachteten Pflanzen in Moos auf steilen Rücken und kletterten in Gehölze. Dieses Feldbild stützt ein luftiges, feucht bleibendes Wurzelmedium. Es rechtfertigt nicht die pauschale Aussage, jede Pflanze sei epiphytisch, jeder Standort habe denselben Bodentyp oder Wasser fließe ständig mit messbarer Rate durch die Wurzeln. Die Funktion des Mediums ist, Feuchte bereitzustellen und zugleich Sauerstoff im Wurzelraum zu erhalten. Verdichtung und dauerhafte Staunässe können diese Balance zerstören.
In Töpfen lassen sich faserige und grobe strukturgebende Bestandteile kombinieren. Welche Mischung stabil bleibt, hängt von Topfgröße, Gießrhythmus, Materialqualität und Luftbewegung ab. Das alte Profil nannte genaue Prozentbereiche für Rinde, Bims, Perlit, Sphagnum und Humus; solche Zahlen stammen nicht aus artspezifischen Versuchen und werden gestrichen. Besonders zersetztes Feinmaterial kann in einem warmen, ständig nassen Behälter die Poren verschließen. Umgekehrt trocknet ein sehr grobes kleines Gefäß rasch aus. Die Pflanze braucht einen überprüften Kompromiss.
Mineralarmes Wasser vermindert langfristige Salzansammlung. Die Entwicklung neuer Blätter, lebende Wurzeln und stabile Kannenansätze sind brauchbare Signale, aber kein einzelnes Merkmal beweist eine bestimmte Ursache. Bei schwachem Wachstum werden Medium und Bewässerung zusammen mit dem Temperaturgang geprüft. Ein pauschales pH-Ziel, eine exakte Luftporenzahl oder die Aussage, die Art vertrage Trockenheit besser als Sauerstoffmangel, sind mit den vorliegenden Quellen nicht artspezifisch belegt. Solche vermeintlich präzisen Regeln würden nur Sicherheit vortäuschen.
practice
Praxisnotizen
Zur Identitätsprüfung werden reife Kannen, ihre schräg stehende Mündung, das gerippte Peristom mit gebogenen Haken und der schiefe Blattgrund dokumentiert. Die Originalautoren beschrieben eine starke Veränderlichkeit der Haken zwischen Kannen derselben Pflanze. Darum ist eine noch wenig gezähnte Jugendkanne kein Grund, das Etikett sofort zu ändern. Umgekehrt wird eine unbekannte Hybride mit auffälligen Zähnen nicht allein dadurch zur reinen N. hamata. Herkunftsangabe, Klonname und eventuelle Eltern werden getrennt geführt.
Bei ausbleibenden Kannen werden zunächst die jüngsten Blätter und Ranken untersucht. Ein neuer, gesunder Trieb kann nach Kulturänderung verzögert Kannen bilden. Trockene Ranken, dauerhaft warme Nächte, verdichtetes Medium oder unstete Feuchte sind mögliche Ursachen, aber keine lässt sich aus einem Symptom sicher allein diagnostizieren. Temperaturverlauf und Wasserführung werden über mehrere Wochen protokolliert. Die alte Checkliste mit festem Zahnausfall als Stressmarker und sofortiger Einzelkorrektur wird gestrichen.
Die Art wird mit der aktiven Hochlandgruppe, dem Hochlandkulturprofil und dem vorhandenen Gattungsprofil verknüpft. Die beobachtungsbezogenen Intervalle bleiben 14 Tage im Wachstum und 7 Tage bei Sämlingen; die 21-Tage-Dormanzschiene wird nicht als normale Artphase verwendet. Ein Bild ist im aktuellen Export nicht vorhanden. Der Forschungsartikel zeigt zwar genau benannte N. hamata-Kannen, doch daraus folgt keine frei übertragbare Lizenz für eine einzelne Bilddatei mit vollständigem Urhebernachweis. Bis ein solches Asset direkt geprüft ist, bleibt das Bildfeld leer.
sources
Quellenangaben
Quellenstand: 28.09.2026. Exakte klimatische Kulturgrenzen für N. hamata sind aus diesen Quellen nicht gesichert; die Hochlandführung ist eine begründete Ableitung aus den Feldbelegen.
- Royal Botanic Gardens, Kew (Abruf 28.09.2026): Nepenthes hamata J.R.Turnbull & A.T.Middleton, Plants of the World Online. Akzeptierter Name, Synonym N. dentata und Zentral-Sulawesi. Taxondatensatz.
- John R. Turnbull und Anne T. Middleton (1984): Three new Nepenthes from Sulawesi Tengah, Reinwardtia 10(2), S. 107–111. Originaldiagnose, Typus 83121a, Höhenbelege, Moosstandort, variable Haken und Vergleich zu N. tentaculata. Originalartikel.
- International Plant Names Index (Abruf 28.09.2026): Nepenthes hamata, Publikationsangabe 1984. Namensdatensatz.
- Derek E. Moulton, Hadrien Oliveri, Alain Goriely und Chris J. Thorogood (2023): Mechanics reveals the role of peristome geometry in prey capture in carnivorous pitcher plants (Nepenthes), Proceedings of the National Academy of Sciences 120, e2306268120. Gattungsmechanik, Modellgrenzen und ausdrücklich ungeklärte Funktion großer Zähne; N. hamata als Bildbeispiel. DOI, Volltext.
Zitieren